信号通路
1.NF-κB 信号通路
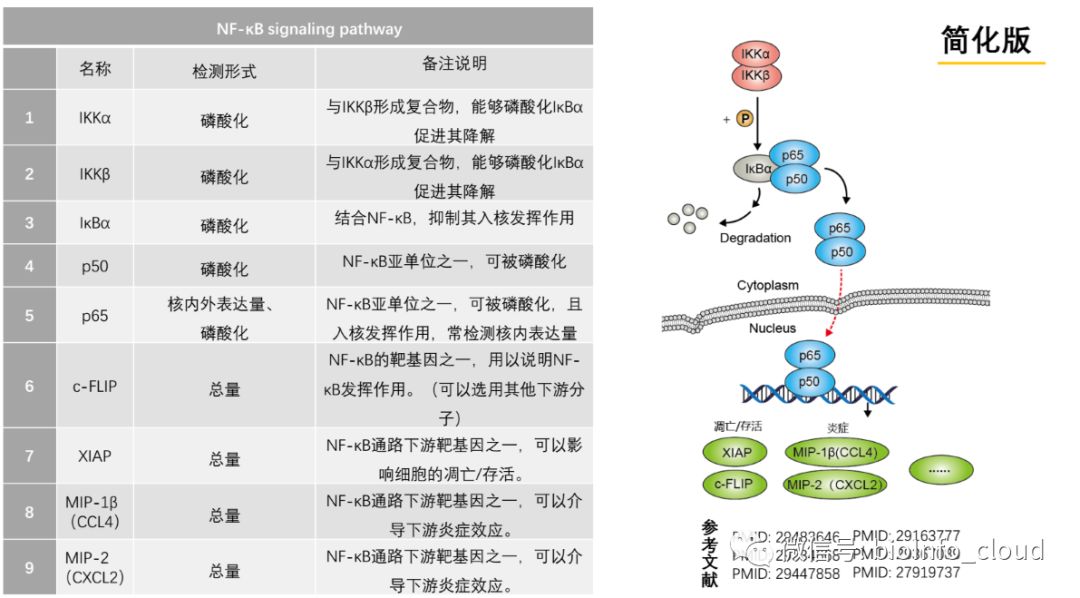
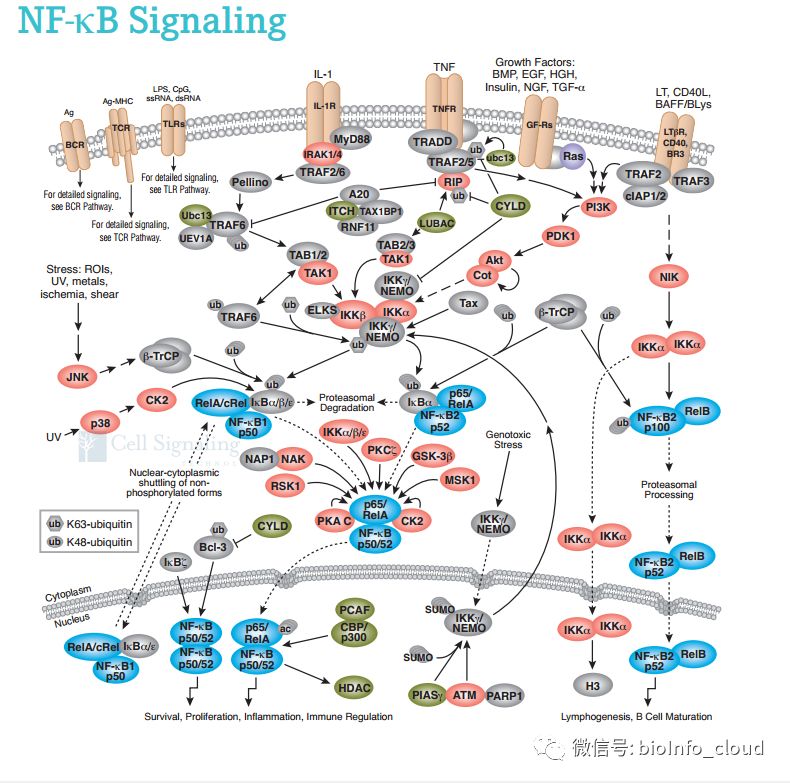
NF-κB(nuclear factor-kappa B)是 1986 年从 B 淋巴细胞的细胞核抽提物中找到的转录因子,历史很久远了,属于通路里的老大哥。NF-κB 是一种重要的转录因子,在炎症、免疫、细胞增殖、分化以及存活过程中扮演重要角色。肿瘤微环境中潜在的炎症会造成 NF-κB 异常激活,更进一步促进癌症侵袭和转移。所以,NF-κB 被认为是炎症和癌症之间的重要纽带。NF 是核因子,κB 是因为它能与免疫球蛋白 kappa 轻链基因的增强子 B 序列特异性结合,促进κ轻链基因表达,因此得名。NF-κB 是一个真核细胞转录因子家族,有多个成员,比较出名的是 p65 和 p50,它们结构中都包含一个约 300 个氨基酸同源结构域。这个高度保守的 domain 能够使得 NF-κB 蛋白形成同源或异源二聚体,这种结构域也是 NF-κB 与靶基因 DNA 序列的特异性结合区域。一般情况下,在细胞质中的 NF-κB 处于失活状态,原因是它的二聚体能与一个抑制蛋白 IκB(inhibitory protein of NF-κB)结合成三聚体复合物。三聚体形式下,NF-κB 没有活性。在信号通路中,转录因子是效应开关,属于下游了,那么它的上游信号是什么呢?NF-κB 通路已知的主要上游信号是肿瘤坏死因子 TNF。TNF 是一种糖蛋白,有两个亚型:TNF-α与 TNF-β。当 TNF 与细胞膜表面的 TNF 受体结合后,受体发生构象改变并且与胞内的下游分子发生相互作用,招募一些蛋白,可以将信号传递给 IKK(IκB kinase)激酶。在 NF-κB 通路里 IKK 扮演了非常重要的角色,尽管上游信号来源有好多条,但是最终都汇集到 IKK。作为激酶的 IKK 能使 IκB 蛋白磷酸化,导致它从三聚体中解离出来,NF-κB 的二聚体就能暴露出核定位序列(nuclear localization signals, NLS),迅速从细胞质进入细胞核内,与核内 DNA 上的特异序列相结合,促进相关基因的转录。但是,之前研究已发现,炎症刺激所诱导的 IKK 活性比 NF-κB 激活所持续的时间长得多,说明可能有一些未知的机制保护 IκB 不被上升的 IKK 磷酸化。NF-κB 的下游基因包括 CyclinD1 和 c-Myc 这些与肿瘤密切相关的蛋白,还有 MMP-9,VEGF 等明星分子。通路的持续激活会导致细胞生长失控,抑制细胞凋亡的功能,促进肿瘤转移和血管新生,涉及表型很多,比较万金油。我们记住其中的明星分子有 p65,p50,IKK,IκB。
2.PI3K/AKT 信号通路
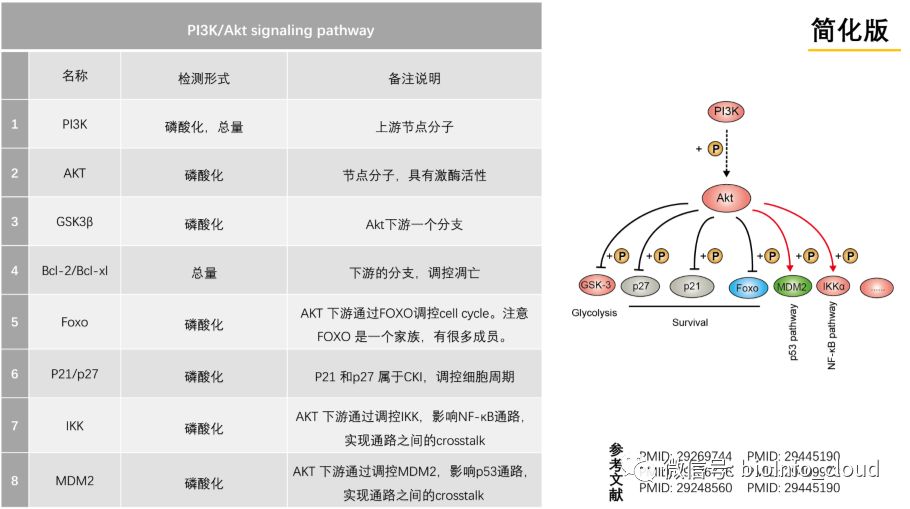
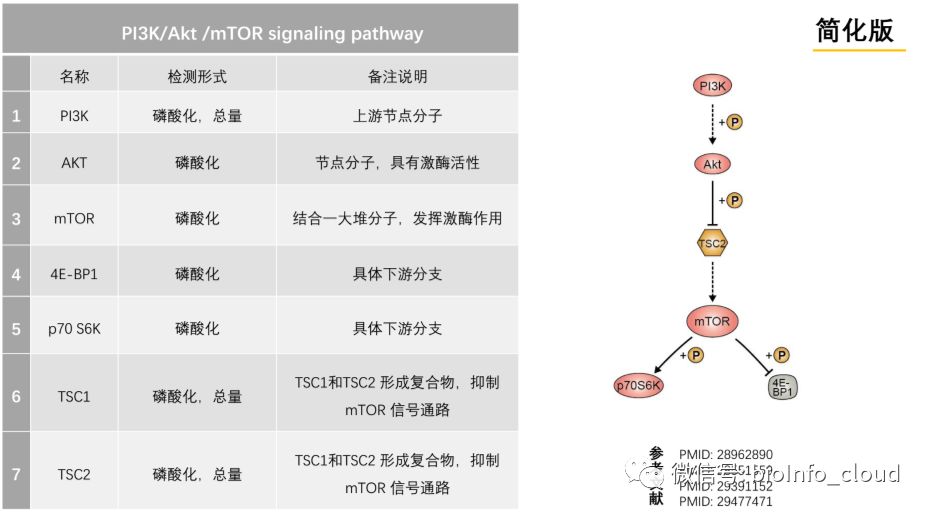
PI3K 是一种胞内的磷脂酰肌醇激酶,具有丝氨酸/苏氨酸激酶的活性,大家记住它是个激酶。PI3K 也是个二聚体,由调节亚基 p85 和催化亚基 p110 构成。PI3K 上游信号一般是生长因子受体比如 EGFR,引起二聚体构象改变而被激活。活化的 PI3K 产生下一级信号,改变 Akt 的蛋白结构。活化的 Akt 通过磷酸化作用激活或抑制下游一系列底物如凋亡相关蛋白 Bad、Caspase9 改变,从而调节细胞的增殖、分化、凋亡以及迁移等表型。大家注意,Akt 也可以激活 IKK,与 NF-κB 通路存在 cross-talk。Akt 激活了 IKK 就能使 NF-κB 从细胞质中释放进行核转位, 激活下游基因表达。Akt 很重要,磷酸化的 Akt 更重要,所以 PI3K 和 Akt 的总蛋白以及磷酸化蛋白都是通路的 Biomarker。PI3K/AKT 的下游靶点是哺乳动物雷帕霉素靶蛋白(mTOR),也是一类丝/苏氨酸激酶,有时候这个通路也叫 PI3K/AKT/mTOR。mTOR 的下游转录因子包括 HIF1α、c-Myc、FoxO 等,都是如雷贯耳的明星分子。这里还要留意一个大名鼎鼎的抑癌蛋白 PTEN,PTEN 是一个磷酸酶,它与 PI3K 的功能正好相反,可去磷酸化,所以 PTEN 可减少 Akt 的活化而阻止所有由 Akt 调控的下游信号传导事件,是 PI3K 的负向调节因子。
mTOR 既可作为单独的通路,也可与 PI3K/Akt 通路结合并称为 PI3K/Akt/mTOR 信号通路,可见其上下游关系具有公认度。该通路是自噬表型中最经典的效应途径,这几年也比较火。
3.MAPK 信号通路
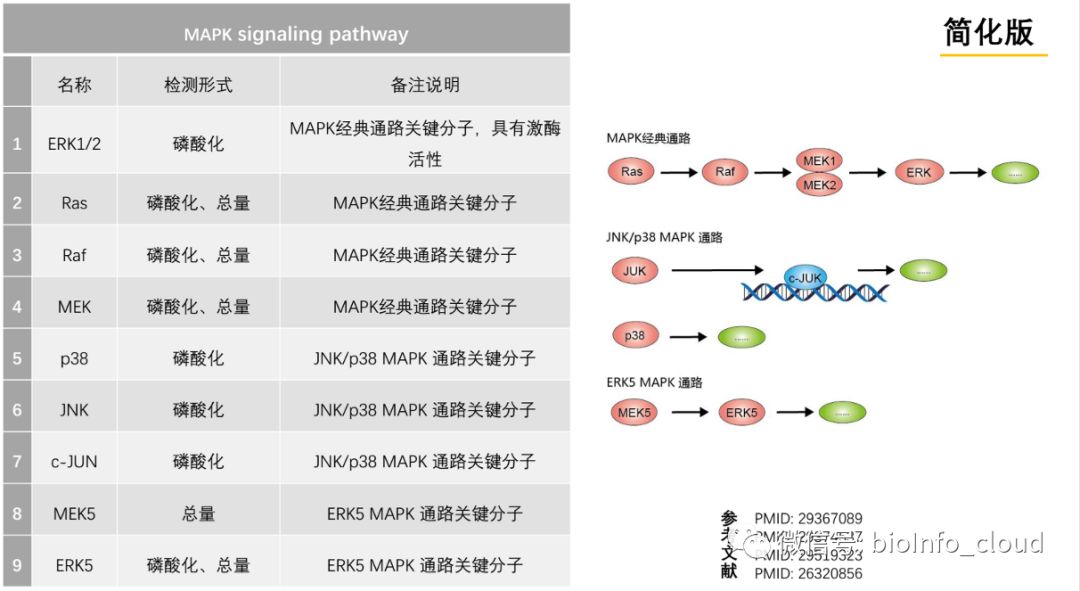
MAPK 翻译过来是丝裂原活化蛋白激酶(mitogen-activated protein kinase,MAPK),也是一种丝-苏氨酸蛋白激酶。细胞因子、神经递质、激素等信号都可以激活 MAPK 的激酶活性。MAPK 通路有三级的信号传递过程,像发射火箭助推点燃一样,它是三级激酶模式:MAPK,MAPK 激酶(MAP kinase kinase,MEK 或 MKK)以及 MAPK 激酶的激酶(MAP kinase kinase kinase,MEKK 或 MKKK)。这三种激酶能依次激活,共同调节着细胞的生长、分化、应激、炎症反应等多种重要的生理/病理效应。MAPK 是通路里最庞大的,具体信号传导有 4 种主要的分支路线:ERK、JNK、p38MAPK 和 ERK5,文章里经常看到的是前三个,ERK 最明星,ERK5 相对小众一点。这些分支路线所使用的 MAPK,MEK 和 MEKK 蛋白都是不同的,所以你会听到有人说 ERK 通路,JNK 通路,或者 p38MAPK 通路,其实都属于 MAPK 通路这个大家庭。JNK 和 p38 介导的功能相似,跟炎症、凋亡、生长都有关,ERK 主要管细胞生长、分化,它的上游信号是著名的 Ras/Raf 蛋白。MAPK 几个通路分支的不同激酶都是它们的 Biomarker。
MAPK 通路信号传导有 4 个主要的分支路线:ERK、JNK、p38 和 ERK5,这些分支路线所使用的 MAPK,MKK 和 MKKK 蛋白是不同的,其中 Ras/Raf 是 ERK 通路的经典上游信号。
MEK(MAPK/ERK 激酶):MEK 分为分子量 44kD 和 45kD 的 MEK1 和 MEK2 两种。Raf 被激活后,它的 C 端催化区能与 MEK 结合,并使其催化区第Ⅷ亚区中两个 Ser 磷酸化,从而使 MEK 激活。MEK 属于少有的双重特异性激酶,使 Tyr 和 Thr 两个调节位点磷酸化而激活 ERK。
MAPK/ERK: MAPK/ERK 是一种 Ser/Thr 蛋白激酶。多种激酶作用于 MEK 时,活化的 MEK 通过其 N 端区域与 ERKs 直接连接,催化 ERK 的亚功能区 8“TEY 盒”中的 Tyr 和 Thr 残基双特异性磷酸化,激活 ERK。MEKs 不仅仅是 ERK 的激活物,还可能是 ERK 在胞浆中的锚定器,当信号通路无活性时,它就将 ERK 固定在胞浆中,一旦有信号刺激 ERKs 磷酸化及二聚体化,它就激活 ERKs 并将其转移到胞核或其它活化位点,再进一步磷酸化下游底物。A.V.Khokhlatchev 等人研究 ERK2 磷酸化后转位入核的过程,发现 ERK2 是通过磷酸化的 ERK2 和磷酸化或未磷酸化的 ERK2 形成同源二聚体转位入核,说明同源二聚体的形成是 ERK 核转位所必需的。
4.JAK-STAT 信号通路
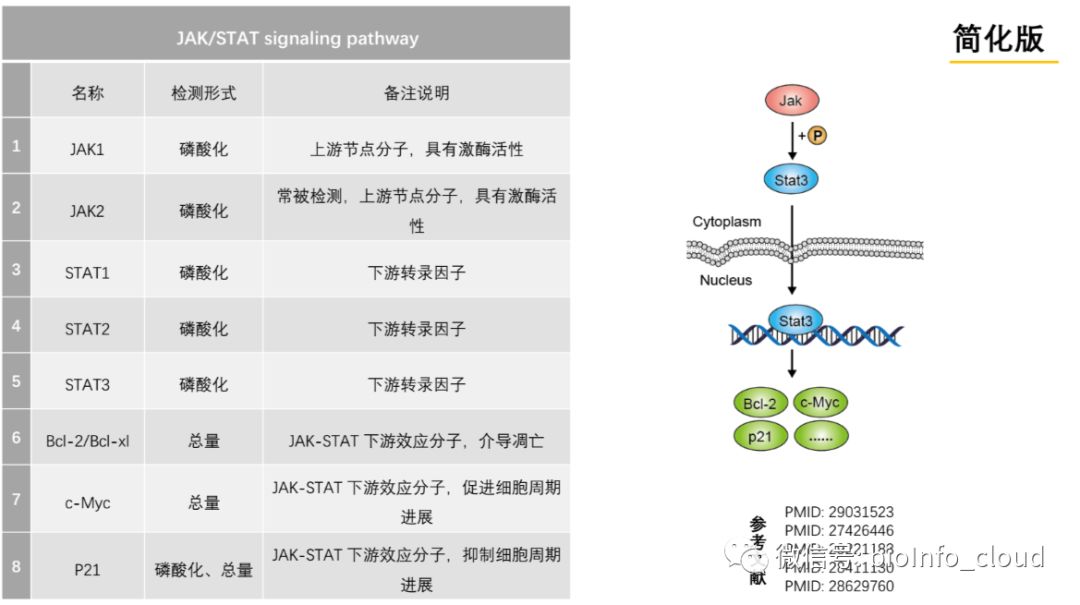
JAK-STAT 也是个万金油,跟细胞的增殖、分化、凋亡都有关系,由三个部分组成:接收信号的酪氨酸激酶相关受体、传递信号的酪氨酸激酶 JAK 和产生效应的转录因子 STAT,通路的三元件结构很清晰。如果觉得前面几个通路比较麻烦,先搞清楚 JAK-STAT,是一个不错的学习切入点。许多细胞因子和生长因子通过 JAK-STAT 信号通路来传导信号,这包括白介素 2、GM-CSF(粒细胞/巨噬细胞集落刺激因子)、生长激素(GH)、表皮生长因子(EGF)、血小板衍生因子(PDGF)以及干扰素(IFN)等等。这些细胞因子和生长因子在细胞膜上的受体本身不具有激酶活性,但它的胞内段都跟酪氨酸激酶 JAK 有结合位点。这一点与其他通路略有不同,很多酪氨酸激酶是细胞膜受体,而 JAK 却是一类非跨膜型的酪氨酸激酶。当配体和受体结合后可以活化 JAK,使其发生自身磷酸化,活化后的 JAK 再作为激酶磷酸化下游靶蛋白的酪氨酸残基,实现信号转递。转录因子 STAT 被招募并且被 JAK 磷酸化修饰后,就形成了活化的状态,活化的 STAT 蛋白以二聚体的形式进入细胞核内与靶基因结合,调控下游基因的转录。所以在 JAK-STAT 通路中,磷酸化的 JAK 和 STAT 蛋白表达都是重要的 Biomarker。
5.TGF-β信号通路
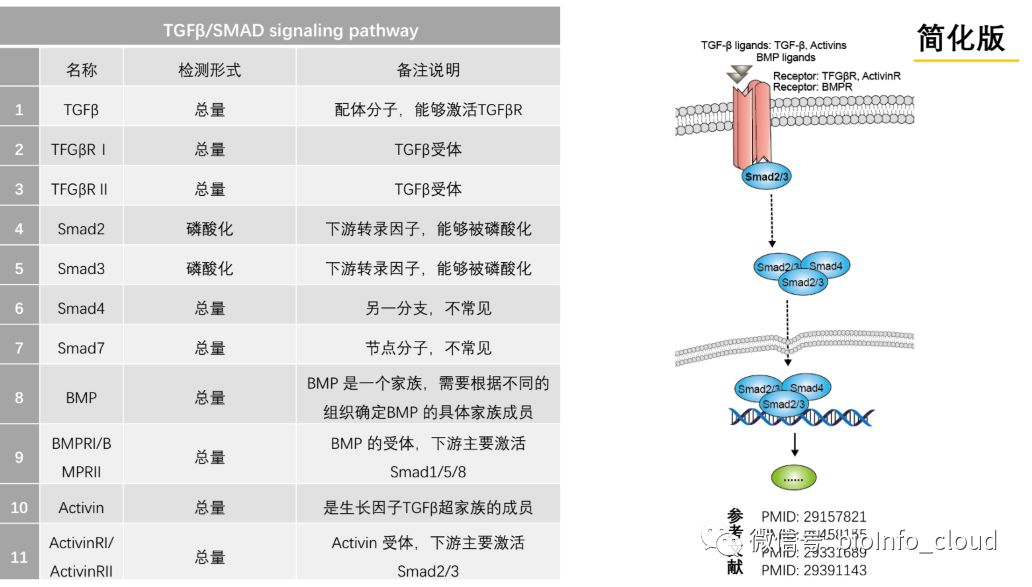
TGF 是转化生长因子(transforming growth factor),TGF-β信号通路经常会称为 TGF-β/SMAD 信号通路,为什么?因为 SMAD 是 TGF-β信号通路的效应转录因子,就跟 JAK-STAT 中的 STAT 一样。TGF-β比较复杂的地方是接收信号的 TGF-β超家族有几十个成员,除了 TGF-β½/3,还有明星分子 BMP(骨形态发生蛋白)。这样 TGF-β通路的信号来源配体分为两类,TGF-β和 BMP。所以说到 BMP 通路其实是 TGF-β通路的一个分支。TGF-β通路和很多通路也存在 cross-talk。要检测 TGF-β通路活性一般检测 TGF-β、TGF-β的受体、SMAD 或者是 BMP。
6.Wnt 信号通路
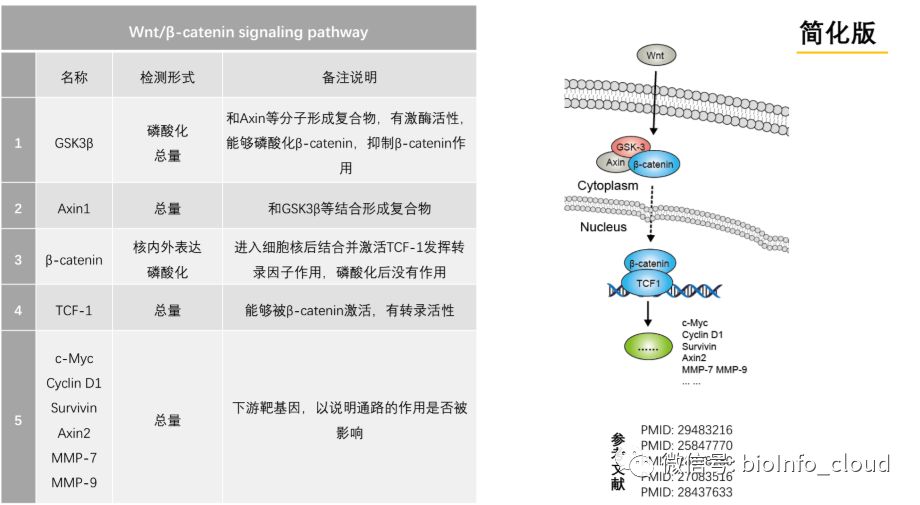
我记得七八年前 Wnt 还只是个小众通路,后面随着上皮间质转化 EMT 研究的热潮,一下子火了起来,TGF-β和 Wnt 都是对 EMT 的调节是至关重要的通路。Wnt 通路分为经典和非经典两条路径,一般提到 Wnt 信号通路主要指的是由β-Catenin 介导的经典 Wnt 信号通路。Wnt 是一类分泌型糖蛋白,通过自分泌或旁分泌发挥作用。接收 Wnt 信号的是跨膜受体 FZD 蛋白家族,随后通过下游蛋白激酶的磷酸化作用影响β-Catenin 的降解;Wnt 激活的时候,β-Catenin 的降解活性受到抑制,胞浆中稳定积累的β-Catenin 进入细胞核后结合 TCF/LEF 转录因子家族,启动下游靶基因的转录。所以β-Catenin 是检测 Wnt 是否激活的一个重要 Biomarker。
7.Notch 信号通路
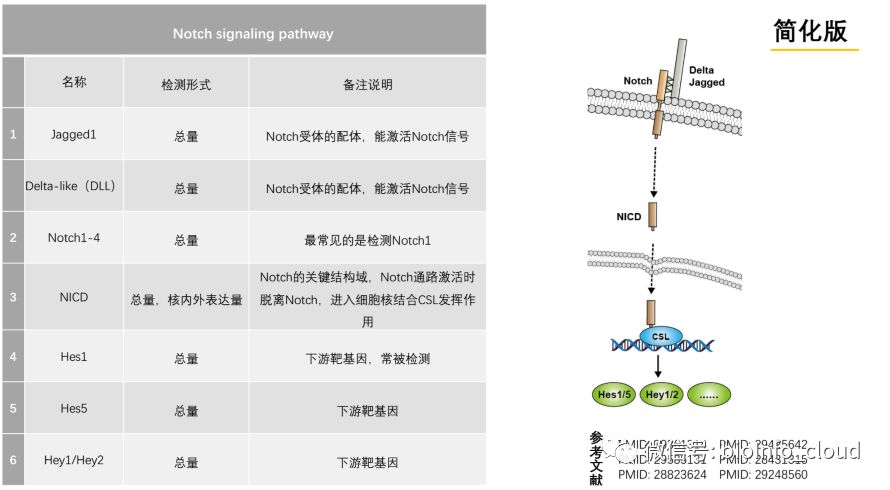
Notch 跟前几个通路比起来算是小众。Notch 跟前面讲的通路模式有两个显著区别:第一,Notch 的受体和配体都是膜蛋白,它介导的是两个细胞相互靠近接触之后的活化效应,而不是由分泌型的蛋白作为配体。第二,Notch 信号途径不是通过激酶磷酸化逐步活化传递信号,它是 Notch 通过三步蛋白酶切水解,一步一步把有转录调节活性的 Notch 蛋白片段释放出来实现活化。这个切完的具有核定位信号的 Notch 蛋白片段叫 NICD(Notch intracellular domain)或者 ICN(intracellular domain of Notch),翻译过来就是 Notch 的胞内结构域。NICD 与转录因子 CSL 结合,调节下游基因表达。
8.Hedgehog 信号通路
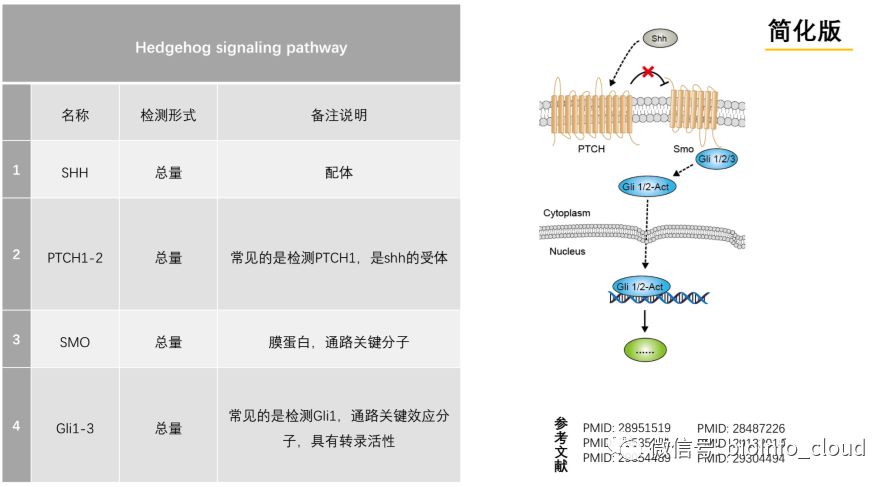
Wnt、Notch 经常和 Hedgehog 放在一起说,因为这三条通路的 cross-talk 非常密切。Hedgehog 通路的配体就是 Hh 蛋白,需要经过一系列加工才有活性。Hedgehog 通路的受体有两种,一种是 Ptc,一种叫 Smo。这个通路的特点是内部具有反馈调节机制,正常情况下,Smo 是正向激活转录因子,但另一个受体 Ptc 能抑制 Smo 蛋白活性,抑制下游通路,实现自我调节。Hedgehog 通路的转录因子是 Gli 蛋白家族,有几种不同亚型,Gli1 是常见的检测对象。这个通路的配体、受体、转录因子一目了然,没有中间复杂的信号传递过程,主要是注意它的反馈调节特点。
9.Hippo 信号通路
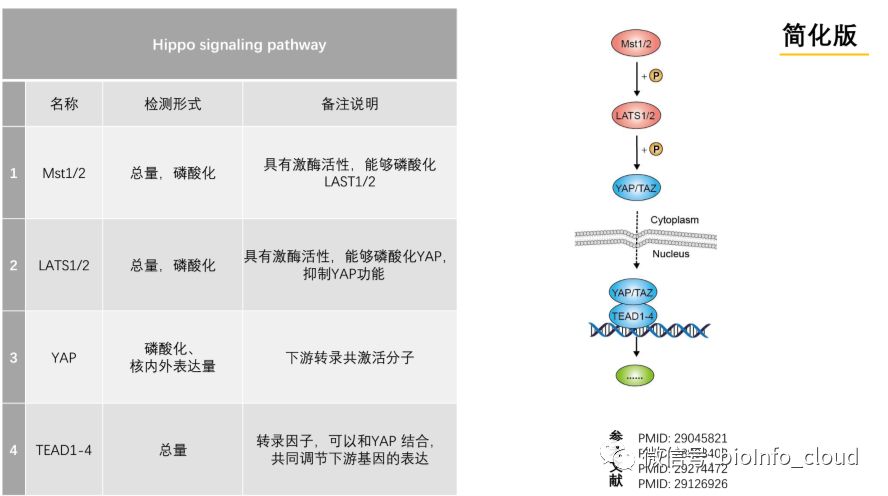
Hippo 是信号通路中的新宠,最先在果蝇中发现 Hippo 参与调控器官大小发育,后来的研究发现在哺乳动物的发育过程中有相似功能。现在研究已经证实这条通路还可以调控干细胞自我更新及组织再生,与癌症的发生也密切相关。Hippo 通路结构也不复杂,由一组保守的激酶组成,上游的膜蛋白受体感受到胞外环境的信号后,经过一系列激酶的磷酸化反应,最终作用于下游效应因子 YAP 和 TAZ。YAP/TAZ 具有转录调节功能,能对细胞表型精细调控。Hippo 通路调控细胞的增殖、分化以及凋亡的机制要么直接作用于这些表型的关键分子,要么与其他通路发生 cross-talk,Hippo 跟 Notch、Wnt、MAPK 都有交集。通路之间各种交互影响千万要习惯,分子调控是一种网状的形式,并非线性的,肯定会产生交叉。
如果想了解更多信号通路的相关资料,关注我们,后台回复:信号通路资料
更新: 2023-09-04 11:41:44 原文: https://www.yuque.com/doublehelix/bioinfonotes/mscfog